Sabe aquela cena que a gente vê nos filmes e documentários, em que aparecem aqueles dinossauros pescocudos se erguendo nas patas traseiras para pegar folhagem no alto das árvores, ou para disputas? Pode parecer apenas um apelo midiático, mas a verdade é que essa é uma questão que gera muito debate entre os paleontólogos há décadas.
Cena do filme “Jurassic Park” (1993) mostrando um Brachiosaurus se erguendo nas patas traseiras para alcançar a folhagem na copa das árvores.
Existem diferentes linhas de evidência que testam se esses dinossauros sauropodes poderiam realmente se erguer sobre as patas traseiras. A maioria dos estudos avaliou a morfologia das vértebras e suas articulações, e também a análise macroscópica 3D dos ossos das pernas. Entretanto, o que mais me perturba é que há relativamente poucos estudos que avaliem esse problema em escala microscópica, no nível do arranjo dos tecidos.
Tito Aureliano encarando um titanossauro em um museu na Patagônia. Argentinosaurus foi um dos maiores animais terrestres.
O enigma disso tudo e que o mesmo tipo de cristal biomineralizado que tem no osso de um Brontosaurus de 20 toneladas e o mesmo que esta no esqueleto humano, ou em um sapinho, ou em uma vaca: a hidroxiapatita (Ca₁₀(PO₄)₆(OH)₂). Se o mesmo tecido mineralizado compõe o esqueleto humano, e a gente já tem problemas relacionados à postura ereta, com nossa estatura e massa, como poderiam esses dinossauros ter atingido mais de 30 m e 25 toneladas e várias espécies?
Figura de Aureliano et al. (2026) mostrando a carga gravitacional estática em função de (a) circunferência óssea, (b) área cortical, (c) volume cortical. Silhuetas criadas por Michael Taylor, Jagged Fangs Designs e Ryan Santos
A nossa equipe publicou um artigo essa semana (link aqui), com autores paleontólogos e físicos, do Brasil e dos EUA, avaliando a microestrutura dos ossos das patas das várias linhagens dos dinossauros sauropodes. Nós comparamos a proporção do tecido ósseo compacto (córtex) versus a quantidade de tecido esponjoso dentro dos ossos das patas de diferentes espécies, e comparamos com a massa corporal estimada para cada indivíduo. A hipótese era testar se os dinossauros gigantes atingiram o limite máximo de tamanho disponível na evolução dentro das condições de gravidade na Terra. A gravidade do nosso planeta permanece aproximadamente constante desde o início, e todos os organismos que evoluíram até hoje foram submetidos às mesmas condições e pressões seletivas decorrentes da física.
Nossos resultados indicaram uma associação positiva entre o aumento do tecido compacto e as patas dos sauropodes. E que a carga gravitacional exercida nas patas traseiras nunca excedia 10 MPa, nem mesmo nos maiores animais. Essa margem está uma ordem de grandeza abaixo do limite de ruptura da apatita composta dos ossos (150-200 MPA) e duas ordens de grandeza abaixo da taxa de ruptura do mineral hidroxiapatita (1000 MPA). Portanto, era perfeitamente possível existirem seres gigantes dentro das condições físicas do planeta Terra.
Figura de Aureliano et al. (2026) mostrando a carga compressiva nos membros posteriores nas posturas normal e de empinamento em saurópodes. Ilustrações em silhueta de Steveoc 86.
Agora, em todo o registro fóssil, nunca encontramos um organismo terrestre do tamanho de um Godzilla, um kaiju. Alguma outra variável deve estar limitando a evolução do tamanho colossal nos animais. Isso ainda deve ser investigado pelos paleontólogos.
Você pode assistir vídeos sobre essa pesquisa aqui:
Aureliano, T., Ghilardi, A. M., Woodward, H. N., Alves, H. W. L., & Sipahi, G. M. (2026). Cortical bone geometry and static gravitational loads in neosauropod dinosaurs: Implications for biomechanical constraints on terrestrial gigantism. The Anatomical Record, 1–16. https://doi.org/10.1002/ar.70383
Se você conhece um pouco de paleontologia do Brasil, provavelmente já ouviu falar dos fósseis da região do Araripe. Afinal, essa região abriga alguns dos fósseis mais extraordinariamente preservados do mundo! Embora esses materiais sejam conhecidos há muito tempo, foi apenas nas últimas décadas que estudos começaram a investigar mais detalhadamente os processos responsáveis por sua preservação. Entre os fósseis que mais despertam interesse estão os insetos, organismos que, devido à delicadeza de suas estruturas, apresentam um potencial de preservação relativamente baixo no registro fossilífero.
Na Bacia do Araripe, os insetos fósseis são encontrados principalmente nos calcários laminados da Formação Crato, com cerca de 115 milhões de anos (Figura 1). Esses fósseis passaram a ser descritos de forma mais sistemática e intensiva a partir da década de 1980, com a contribuição de diversos paleontólogos brasileiros e estrangeiros.
Figura 1. Holótipo da libélula Cratostenophlebia schwickerti depositado no Wyoming Dinosaur Center, EUA. Dr. Günter Bechly, CC BY-SA 3.0, via Wikimedia Commons
A maior parte das publicações sobre esses insetos se concentra em aspectos relacionados à sua história evolutiva, buscando identificar a quais grupos pertenciam, quais eram seus parentes mais próximos e como se relacionavam com outras espécies fósseis ou atuais. Embora ainda exista uma grande carência de especialistas dedicados a esses estudos taxonômicos, os fósseis oferecem inúmeras outras possibilidades de investigação. Uma delas é a tafonomia, área da paleontologia que estuda os processos envolvidos na formação do registro fossilífero, desde os eventos que antecedem a morte de um organismo até seu soterramento, decomposição e fossilização.
Nesse ponto, os insetos fósseis da Bacia do Araripe representam uma oportunidade extraordinária de investigação. Nos últimos anos, diversos estudos têm explorado sua preservação excepcional, revelando descobertas surpreendentes com o auxílio de técnicas analíticas avançadas, como a microscopia eletrônica e as espectroscopias Raman e infravermelho. Essas abordagens integram o campo da paleometria, que reúne métodos físicos e químicos aplicados à investigação de materiais paleontológicos e no qual pesquisadores brasileiros vêm desenvolvendo contribuições importantes.
Um dos aspectos mais fascinantes desses fósseis é justamente a riqueza de detalhes preservados. Não é raro encontrar insetos da Formação Crato com estruturas extremamente delicadas, como pequenas cerdas, padrões de coloração nas asas e até evidências de suas cores originais. Mas a preservação excepcional não se limita ao exoesqueleto: alguns exemplares apresentam também detalhes impressionantes de estruturas e órgãos internos. Trata-se de uma condição extremamente rara no registro fossilífero, sobretudo porque essas estruturas são constituídas, em grande parte, por tecidos moles, normalmente destruídos durante a decomposição. Graças aos estudos tafonômicos, estamos começando a compreender quais condições ambientais, químicas e biológicas permitiram que detalhes tão delicados atravessassem aproximadamente 115 milhões de anos.
E, já que estamos falando de órgãos internos, uma das descobertas mais interessantes foi apresentada em um estudo publicado em 2025. Nele, pesquisadores investigaram o fóssil de uma fêmea de grilo pertencente à família extinta Baissogryllidae. O exemplar já chamava a atenção pela excelente preservação de suas asas, pernas e ovipositor, estrutura utilizada pelas fêmeas de muitos insetos para depositar seus ovos. Entretanto, uma análise mais detalhada por microscopia eletrônica revelou algo ainda mais surpreendente: pequenas estruturas interpretadas como fragmentos do ovário do animal!
Figura 2. Fotografias de microscopia eletrônica mostrando as estruturas elipsoides encontradas no fóssil da fêmea de grilo. Adaptado de: Dias et al. (2025).
Além disso, os pesquisadores identificaram estruturas elípticas com aproximadamente 40 micrômetros, cuja natureza inicialmente levantou diferentes hipóteses, incluindo a possibilidade de serem ovos de parasitas. Após considerarem as alternativas, os autores propuseram que essas estruturas seriam, mais provavelmente, ovócitos em desenvolvimento, ou seja, células reprodutivas imaturas que ainda estavam no interior do corpo da fêmea quando ela morreu (Figura 2). Em outras palavras, esse pequeno grilo teria preservado não apenas sua aparência externa, mas também vestígios de seu sistema reprodutor!
Outra descoberta também de 2025 revelou a preservação de diferentes estruturas internas de insetos da Formação Crato, incluindo o proventrículo, uma região especializada do sistema digestório que, em muitos insetos, participa da trituração mecânica dos alimentos antes das etapas seguintes da digestão (como a moela das aves). As análises também permitiram identificar microestruturas interpretadas como fibras musculares e detalhes da cutícula abdominal desses animais, ampliando ainda mais nosso conhecimento sobre o extraordinário potencial de preservação desses fósseis (Figura 3).
Nesse mesmo estudo, os autores compararam a qualidade da preservação dos insetos da Formação Crato com a de exemplares provenientes dos famosos calcários jurássicos de Solnhofen, na Alemanha, conhecidos mundialmente por terem preservado, entre outros fósseis excepcionais, o Archaeopteryx. Os resultados indicaram que os exemplares brasileiros analisados apresentavam uma preservação mais detalhada de determinadas estruturas internas e microestruturas do que os fósseis alemães utilizados na comparação.
Fotografias de microscopia eletrônica de dois fósseis de grilos. A esquerda mostra fibras musculares associadas ao intestino, a da direita mostra o proventrículo preservado. Adaptado de: Storari et al. (2024).
Mas o que poderia explicar tal diferença?
Uma das hipóteses discutidas pelos pesquisadores envolve a atuação de tapetes microbianos, comunidades de microrganismos que recobriam partes do fundo do antigo ambiente lacustre onde se depositaram os sedimentos que deram origem à Formação Crato. Quando os insetos chegavam a esse ambiente, seja caindo diretamente na água ou transportados pelo vento e pelas correntes, esses microrganismos poderiam atuar sobre suas carcaças, favorecendo processos de desidratação e estabilização dos tecidos antes do soterramento definitivo. Segundo essa hipótese, tais condições teriam contribuído para a preservação de estruturas extremamente delicadas, inclusive aquelas que normalmente desapareceriam durante a decomposição. Diferenças nesses processos poderiam ajudar a explicar os contrastes observados entre os fósseis brasileiros e os de Solnhofen.
Esses são apenas alguns exemplos de como a riqueza paleontológica da Bacia do Araripe vai muito além dos seus famosos dinossauros, como o Irritator, pterossauros e peixes. Mesmo os menores e mais delicados organismos podem guardar informações extraordinárias sobre a vida e os ambientes de milhões de anos atrás. E, à medida que novas técnicas são aplicadas a esses materiais, descobrimos que fósseis conhecidos há décadas ainda têm muito a nos revelar.
Cabe a nós, paleontólogos, investigar esses vestígios e traduzir as histórias que eles nos permitem reconstruir. Mas a responsabilidade de proteger esse patrimônio é coletiva. Afinal, os fósseis não são apenas objetos de estudo: são registros insubstituíveis da história natural do nosso território e parte do patrimônio científico e cultural brasileiro. Preservá-los significa assegurar que as próximas gerações também tenham a oportunidade de estudá-los, fazer novas descobertas e conhecer sua própria história, em vez de vê-la desaparecer em coleções inacessíveis, muitas vezes do outro lado do mundo.
REFERÊNCIAS Bezerra, F. I., da Silva, J. H., Miguel, E. D. C., Paschoal, A. R., Nascimento Jr., D. R., Freire, P. T.; Mendes, M. (2020). Chemical and mineral comparison of fossil insect cuticles from Crato Konservat Lagerstätte, Lower Cretaceous of Brazil. Journal of Iberian Geology, 46(1), 61-76.
Delgado, A. D. O., Buck, P. V., Osés, G. L., Ghilardi, R. P., Rangel, E. C.; Pacheco, M. L. A. F. (2014). Paleometry: a brand new area in Brazilian science. Materials Research, 17, 1434-1441. http://doi.org/10.1590/1516-1439.288514
Dias, J. J., Carvalho, I. D. S., Souza-Dias, P. G., Zefa, E., Barros, C. D. L., Prado, G.; Osés, G. L. (2025). Reproductive organs of a Grylloidea fossil from the Cretaceous Araripe Basin, Brazil. Journal of the Geological Society, 182(3), jgs2024-211. https://doi.org/10.1144/jgs2024-211
Storari, A. P., Osés, G. L., de Almeida-Lima, D. S., Rizzutto, M. A., Bantim, R. A. M., de Lima, F. J.; Sayao, J. M. (2024). Exceptionally well-preserved orthopteran proventriculi from the Cretaceous Crato Formation of Brazil. Journal of South American Earth Sciences, 133, 104737. https://doi.org/10.1016/j.jsames.2023.104737
Storari, A. P., Oses, G. L., Staniczek, A. H., Rizzutto, M., Loeffler, R.; Rodrigues, T. (2024). Paleometric approaches reveal striking differences in the insect fossilization of two Mesozoic Konservat-Lagerstätten. Frontiers in Ecology and Evolution, 12, 1445160. https://doi.org/10.3389/fevo.2024.1445160
É surpreendente a diversidade de organismos que vivem no nosso planeta na atualidade. Biomas, como a Amazônia, possuem uma riqueza imensa de espécies e, a cada ano que passa, muitas novas ainda são descobertas e descritas. Mas quando a gente olha para o registro fossilífero, as coisas não parecem assim tão diversas. Será que não existiram grandes e ricos recifes e florestas no passado? Ou será que todo o registro fossilífero é cheio de lacunas? O que determina a preservação ou destruição dos restos e vestígios de organismos ao longo do tempo geológico? Existem condições perfeitas de fossilização capazes de preservar a diversidade de um bioma inteiro? A resposta para essas perguntas é motivo de muita investigação e várias explicações precisam atuar em conjunto para compreendermos essas questões.
Como toda ciência natural, na paleontologia a explicação nunca é simples.
Tafonomia (do grego, Taphos = sepultamento, nomos = lei) é o ramo da paleontologia que estuda como os fósseis se tornam fósseis. Ela busca entender todas as etapas, processos e condições que culminam na formação de um fóssil: desde a morte de um organismo (ou até antes dela) até seus restos serem encontrados por pesquisadores. Nos últimos 50 anos, essa ciência tem ganhado destaque e envolvido muitas ferramentas de investigação, incluindo a aplicação de técnicas de alta tecnologia para investigar a fundo como acontece a preservação dos fósseis, até análises estatísticas complexas e comparação com o que acontece com os restos de organismos viventes em estudos experimentais de tafonomia atualística (usando o atual para entender o passado). A partir disso, hoje conhecemos diversas variáveis que levam à preservação de um fóssil.
É claro que um dos fatores está relacionado com a natureza do resto. Basta observar o quanto conchas (material mineralizado) podem resistir por muito tempo na praia, mesmo sob ação de ondas, e uma fruta (material mole, não mineralizado) é consumida completamente por fungos e outros organismos decompositores em poucos dias. Logo, é muito mais provável a fossilização de uma concha do que de um fruto. Igualmente, conchas maiores e mais grossas têm maior potencial de preservação do que conchas menores e mais finas, pois conseguem resistir mais facilmente à fragmentação e abrasão. Indo mais além, restos compostos por minerais mais resistentes, como calcita e fosfato, têm maiores chances de preservação do que aqueles formados por minerais menos resistentes e assim por diante.
Baseados nesses preceitos, conhecemos uma ordem de preservação (veja a figura 1), exemplificada aqui numa sequência de elementos com maior potencial de preservação, até elementos muito delicados e “pouco preserváveis”: dentes > ossos e conchas > troncos > folhas > exoesqueletos (por exemplo, carapaças de insetos) > partes moles como frutos, flores, pele, músculos, etc.
Figura 1: modelo tafonômico de resistência dos materiais frente à incompletude fóssil. Partes duras possuem registro fóssil mais completo e partes moles têm registro fóssil mais incompleto. Extraído de Simões et al. (2010).
Agora, a paleontologia não é feita apenas de dentes, ossos e conchas… São fascinantes as descobertas de pele, pelos, penas, órgãos internos, frutas e até olhos em fósseis de milhões de anos, com detalhes anômicos que parecem desafiar a passagem do tempo. Apesar de raros, existem alguns depósitos fossilíferos com excelente qualidade de preservação e abundante diversidade de organismos preservados. Esses lugares recebem o nome, na paleontologia, de Lagerstätten (ou Lagerstätte, no singular) e são pontos de grande interesse para diversos tafônomos (o/a paleontólogo/a que trabalha com tafonomia) entenderem os processos de fossilização.
No Brasil, temos vários lugares assim, incluindo o mundialmente famoso “Araripe Largestätte”(figura 2 e 3), onde são encontrados peixes com preservação de tecidos moles e órgãos internos, incluindo o coração, penas que conservam evidências de padrões de coloração, insetos praticamente completos (com asas, olhos e outros detalhes anatômicos delicados), além de frutos, sementes e muitos outros organismos. Outro exemplo notável é o Folhelho Lontras, na Bacia do Paraná, em Santa Catarina, um Lagerstätte do final do Paleozoico que preserva uma associação diversificada de organismos marinhos (figura 3).
Figura 2: Exemplos de fósseis da Formação Crato, da Bacia do Araripe, Cretáceo do Nordeste brasileiro. A) estrutura de reprodução de gimnosperma. Extraído de Ribeiro et al., (2021). B) Inseto hemíptero. Extraído de Ribeiro et al., 2021. C) Coração fossilizado de peixe Rhacolepis buccalis. Extraído de Maldanis et al. (2016). D) Penas fossilizadas. Extraído de Prado et al., (2016).Figura 3: exemplos de reconstituições paleoambientais. A) reconstituição paleoambiental da Formação Crato, da Bacia do Araripe (CE), Cretáceo e suas variações sazonais do nível de água. Extraído de Ribeiro et al., (2021), paleoarte de Vitor Silva. B) reconstituição paleoambiental de fiorde temperado e distribuição dos organismos no ambiente marinho fechado profundo do Fossil-Lagerstätte Carbonífero do Folhelho Lontras, Formação Campo Mourão, na Bacia do Paraná (SC). Extraído de Saldanha et al., (2023a), paleoarte de Júlia D’Oliveira.
Com o conhecimento obtido nos Lagersttäten e, claro, em outros sítios paleontológicos, sabemos que a preservação de um fóssil depende não só da composição química dos restos de um organismo, mas também de fatores externos, como a velocidade de soterramento dos restos e fatores químicos e físicos do ambientede sedimentação.
Muito desse conhecimento vem da geologia. A grande maioria dos fósseis é preservada em depósitos sedimentares, formados em ambientes nos quais sedimentos se acumulam ao longo do tempo, como rios, lagos, desertos, planícies costeiras e fundos marinhos. Esses sedimentos podem soterrar e incorporar restos ou vestígios de organismos, criando condições para que sejam preservados no registro geológico. Na tafonomia, restos biológicos podem ser analisados como componentes sedimentares, pois, depois da morte, passam a estar sujeitos a muitos dos mesmos processos físicos que atuam sobre os grãos minerais, ou clastos, que constituem as rochas sedimentares.
Um rio transportando areia, por exemplo, pode carregar simultaneamente escamas, ossos, dentes, conchas, fragmentos vegetais e até carcaças inteiras de organismos. A preservação desses materiais (ou sua completa destruição) dependerá da interação entre as características físicas e químicas dos restos e as condições do ambiente. Sabemos que elementos altamente mineralizados, como ossos, dentes e conchas, resistem mais à destruição do que elementos delicados, como flores. Logo, em ambientes de alta energia, como nas corredeiras de um rio ou em uma praia com ondas, restos mineralizados têm mais chance de preservação. Já elementos delicados, como flores, são facilmente destruídos. Rios meandrantes e lagos, por outro lado, fornecem uma chance maior de preservação para restos delicados, por serem ambientes mais calmos. Inclusive, é possível inferir a distância que um resto foi transportado pelo seu grau de desarticulação, fragmentação e abrasão.
Um outro fator importante é o tempo de exposição dos restos. Bactérias, fungos e animais carniceiros podem consumir completamente os restos de um organismo antes de ele ser definitivamente soterrado. Um soterramento rápido, por outro lado, pode evitar o consumo por carniceiros e também limitar a disponibilidade de oxigênio, reduzindo a ação de decompositores. Ambientes anóxicos (sem oxigênio), como lagos profundos, por exemplo, também são ótimos para evitar a proliferação de organismos decompositores, favorecendo até mesmo a preservação de partes moles.
Mas há um paradoxo: às vezes a ação dos microrganismos decompositores ao consumirem parte da matéria orgânica gera subprodutos químicos que podem ajudar na preservação de algumas estruturas, como foi o caso da preservação do coração em um peixe do Araripe (Figura 2B; Maldanis et al., 2016). Logo, os momentos que cercam o soterramento são cruciais para definir a preservação de um resto. É durante essa etapa que ações químicas e físicas (de natureza biogênica ou abiogênica) estão ocorrendo, contribuindo para o estabelecimento de um microambiente específico ao redor do resto, que poderá ou não determinar a sua preservação.
Mas não pense que termina por aí: os processos que vão converter o sedimento (e o resto do organismo) em rocha (e fóssil) também podem ter potencial destrutivo. A formação das rochas sedimentares (ou diagênese sedimentar) envolve alterações físicas e químicas em alta profundidade na crosta terrestre. O aumento da temperatura e da pressão nesses ambientes pode tanto estabilizar os restos e garantir a sua preservação como também destruí-los. Tudo depende de uma junção de fatores favoráveis.
Como se não bastasse, um fóssil pode passar por tudo isso eainda assim ser destruído. Movimentos tectônicos, ao exporem novamente a camada (agora, de rocha) com os fósseis, sujeitam esta (e os fósseis) às condições climáticas como a chuva e a grande amplitude térmica. A ação da vegetação também pode destruir os fósseis. Ambientes tropicais como o do Brasil, infelizmente, não ajudam: uma vez expostos, os fósseis podem ser degradados rapidamente devido ao elevado intemperismo químico. Assim, Uua vez que um fóssil esteja exposto, começa uma verdadeira corrida contra o tempo, que exige que os paleontólogos encontrem e coletem rapidamente os fósseis, antes que a ação do intemperismo os destrua para sempre
Por isso, os fósseis não são apenas fascinantes, mas raros. Principalmente aqueles que preservam uma riqueza de detalhes que nos fazem suspirar e nos perguntar como algo resistiu tanto ao tempo. Mesmo os menores fragmentos de informação percorrem uma verdadeira jornada e sobrevivem a diversos riscos de degradação até chegarem às mãos de cientistas. Seja um peixe completo, de um fascinante Lagerstätte, ou um raro fragmento de dente de dinossauro de uma camada de rocha quase estéril. Cada fóssil é excepcional à sua própria maneira, e cada um deles nos permite compreender um pouco mais sobre a história desse diverso e dinâmico planeta chamado Terra.
Horodyski, R. S., & Erthal, F. (2017). Tafonomia: Métodos, Processos e Aplicação. Curitiba, CRV. (Livro)
Simões, M. G., Rodrigues, S.C, Bertoni-Machado, C, & Holz, M. (2010). Tafonomia: processos e ambientes de fossilização. In.: Carvalho, Paleontologia. Rio de janeiro: Interciência, 19-45.
Becker-Kerber, B., Osés, G.L., Massini, R.R.R., Curado, J.F., Delgado, A.O., Galante, D., Rodrigues, F., Rizzutto, M.A., Petri, S., Leme, J.M., Pacheco, M.L.A.F. (2014) O estabelecimento da paleometria no Brasil: perspectivas e desafios no estudo de invertebrados fósseis. Paleontologia em destaque. https://repositorio.usp.br/directbitstream/5602bd49-4a41-47d9-9d09-0a01637a36cd/2841464.pdf
Maldanis, L., Carvalho, M., Almeida, M. R., Freitas, F. I., De Andrade, J. A. F. G., Nunes, R. S., Rochitte, C. E., Poppi, R. J., Freitas, R.O. Rodrigues, Sandra Siljeström, S., Lima, F.A., Galante, D., Carvalho, I.S., PEREZ, C.A., Carvalho, A.A. de, Bettini, J., Fernadez, V. & Xavier-Neto, J. (2016). Heart fossilization is possible and informs the evolution of cardiac outflow tract in vertebrates. Elife, 5, e14698. https://doi.org/10.7554/eLife.14698
Prado, G. M., Anelli, L. E., Petri, S., & Romero, G. R. (2016). New occurrences of fossilized feathers: systematics and taphonomy of the Santana Formation of the Araripe Basin (Cretaceous), NE, Brazil. PeerJ, 4, e1916. https://doi.org/10.7717/peerj.1916
Ribeiro, A. C., Ribeiro, G. C., Varejão, F. G., Battirola, L. D., Pessoa, E. M., Simões, M. G., & Poyato-Ariza, F. J. (2021). Towards an actualistic view of the Crato Konservat-Lagerstätte paleoenvironment: A new hypothesis as an Early Cretaceous (Aptian) equatorial and semi-arid wetland. Earth-Science Reviews, 216, 103573. https://doi.org/10.1016/j.earscirev.2021.103573
Ribeiro, A. M. N., Yang, Y., Saraiva, A. Á. F., Bantim, R. A. M., Junior, J. T. C., & de Lima, F. J. (2024). Arlenea delicata gen. et sp. nov., a new ephedroid plant from the Early Cretaceous Crato Formation, Araripe Basin, Northeast Brazil. Plant Diversity, 46(3), 362-371. https://doi.org/10.1016/j.pld.2023.06.008
Saldanha, J. P., Del Mouro, L., Becker-Kerber, B., Ricetti, J. H. Z., Balistieri, P. D. R. M. N., Weinschütz, L. C., & Waichel, B. L. (2023a). Exploring the restricted Lontras Shale fossil record: Data biases or preservational casualties?. Sedimentary Geology, 458, 106533. https://doi.org/10.1016/j.sedgeo.2023.106533
Saldanha, J. P., Del Mouro, L., Horodyski, R. S., do Nascimento Ritter, M., & Schmidt-Neto, H. (2023b). Taphonomy and paleoecology of the Lontras Shale Lagerstätte: Detailing the warming peak of a Late Paleozoic Ice Age temperate fjord. Palaeogeography, Palaeoclimatology, Palaeoecology, 609, 111326. https://doi.org/10.1016/j.palaeo.2022.111326
Santos, A. L. F., Barros, O. A., da Silva, J. H., de Souza, M. D., & dos Santos, S. B. (2023). O estudo de Paleometria na Bacia do Araripe. Research, Society and Development, 12(5), e17512541611-e17512541611. https://doi.org/10.33448/rsd-v12i5.41611
Nos últimos anos, a inteligência artificial tem desempenhado um papel cada vez mais significativo na ciência, impulsionando avanços notáveis na forma em que os cientistas estudam e interpretam uma grande quantidade de dados. A análise de informações tem sido revolucionada pela aplicação de algoritmos, técnicas de aprendizado da máquina (machine learning) e aprendizagem profunda (deep learning), permitindo a extração de informações valiosas a partir de grandes conjuntos de dados, acelerando a identificação de padrões e relações complexas nos mesmos.
Um modelo computacional desenvolvido por técnicas de inteligência artificial exige, inicialmente, um conjunto de dados de treinamento, os quais são, em princípio, variáveis numéricas. Através de um algoritmo de aprendizagem, é realizado o ajuste da saída do modelo, e com isso, pode-se predizer uma entrada nova com base no comportamento das variáveis e dos dados utilizados para treinamento. Em algoritmos mais sofisticados e aprofundados, também é desenvolvido um processo de “reforço e reaprendizagem”, com otimização dos parâmetros, de modo a elevar a acurácia do modelo. Estes modelos aperfeiçoados podem ser úteis na predição, classificação, identificação, e segmentação de imagens, por exemplo. Nestas situações, os dados não-numéricos são previamente convertidos em parâmetros numéricos. Na segmentação de imagens tal conversão ocorre para cada pixel ou conjunto de pixels da figura, reduzindo-a a uma matriz numérica.
Diante do grande desenvolvimento destas técnicas, tem-se empregado, de forma notável, modelos computacionais nas mais diversas esferas científicas, e na paleontologia não foi diferente. Em maio de 2024, Yu e colaboradores fizeram uma busca por artigos científicos de modelos de inteligência artificial no estudo de fósseis, e encontraram um total de 79 trabalhos publicados até a data analisada! A análise dos autores demonstrou a popularização da utilização das técnicas de inteligência artificial na paleontologia, com uma ampla gama de aplicações, e ao mesmo tempo, evidenciou desafios a serem superados. Vamos conhecer os resultados desta pesquisa?
A inteligência artificial no estudo dos fósseis
Embora análises auxiliadas por máquina já tivessem sido propostas anteriormente, a inteligência artificial foi somente apresentada como uma ideia científica em um workshop realizado em 1956, em Dartmouth College, nos Estados Unidos. Desde então, com o desenvolvimento de algoritmos cada vez mais complexos, aliado ao aumento da capacidade computacional, as técnicas de aprendizagem da máquina e aprendizagem profunda tornaram-se cada vez mais apreciadas. Não obstante, a sua utilização no campo da paleontologia se deu tardiamente, somente na década de 80 (Healy-Williams, 1983; 1984). Os trabalhos pioneiros consistiram em, a partir de fotomicrografias, extrair os contornos e caracteres diagnósticos de fósseis de foraminíferos – microorganismos marinhos unicelulares, cujo comprimento máximo geralmente não ultrapassa 1 milímetro – do Quaternário. A técnica empregada, a análise de Fourier, consiste em extrair componentes das imagens através de equações, o que a torna bastante útil no reconhecimento de padrões e objetos.
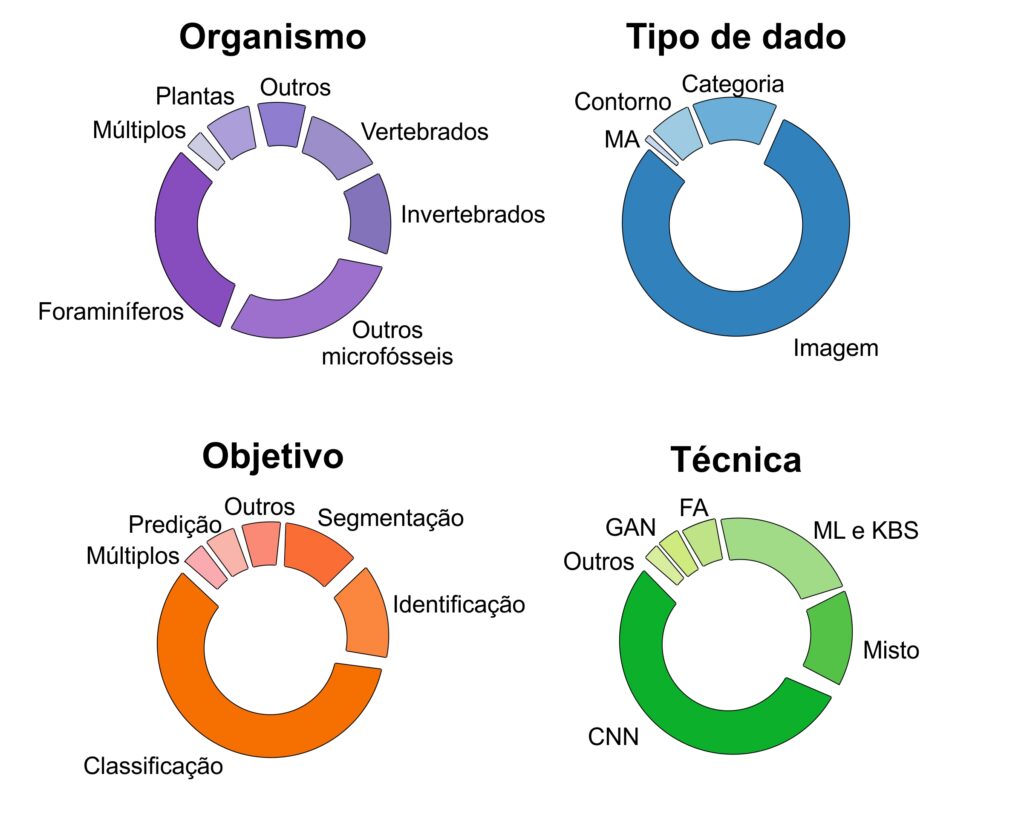
De fato, os foraminíferos têm sido os principais organismos fósseis a serem estudados através da inteligência artificial, chegando a um terço do total de trabalhos publicados nas últimas décadas (Fig. 1). Quando somados a trabalhos que envolvem outros microfósseis – grãos de pólen, esporos de algas, conodontes e radiolários –, o volume de publicações científicas chega à marca dos dois terços. Essa diferença marcante em relação aos macrofósseis (fósseis de maior tamanho) não se deve somente à aplicabilidade econômica dos microfósseis, mas reflete também a facilidade da aplicação das técnicas existentes nesses tipos de fósseis. Ao passo que uma fotografia de um diminuto foraminífero retém muitas informações morfológicas deste organismo, ao se estudar o esqueleto de um dinossauro, por exemplo, podem ser necessárias diversas fotografias em diferentes ângulos. Além disso, a preservação das características anatômicas de animais e vegetais frequentemente é acompanhada por algum nível de deformação, dada pelo processo de fossilização. Seja pela formação de incrustações, fraturas, ou compressão – o que prejudica a performance dos algoritmos. A quantidade de dados disponíveis é outro fator limitante, macrofósseis podem ser mais raros em relação aos microfósseis, os quais podem possuir milhares de amostras correspondentes. Desta forma, os modelos que utilizam microfósseis costumam ser melhor treinados e mais acurados.
Figura 1. A inteligência artificial na paleontologia. Dados de Yu et al. (2024) baseados em 79 trabalhos publicados. MA = marcos anatômicos (landmarks); CNN = redes neurais convolucionais; ML = aprendizagem da máquina (machine learning); KBS = sistemas baseados em conhecimento (knowledge-based systems); FA = Análise de Fourier; GAN = redes adversárias generativas (generative adversarial networks).
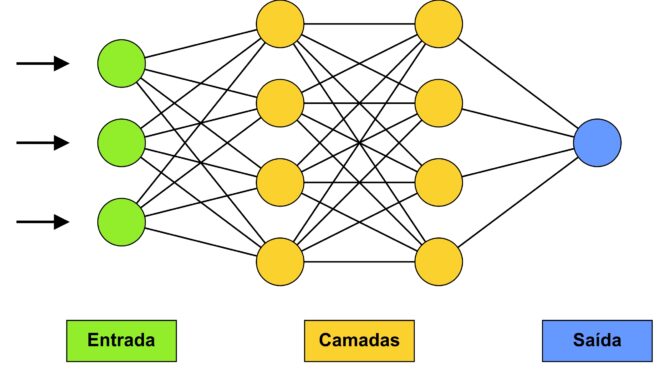
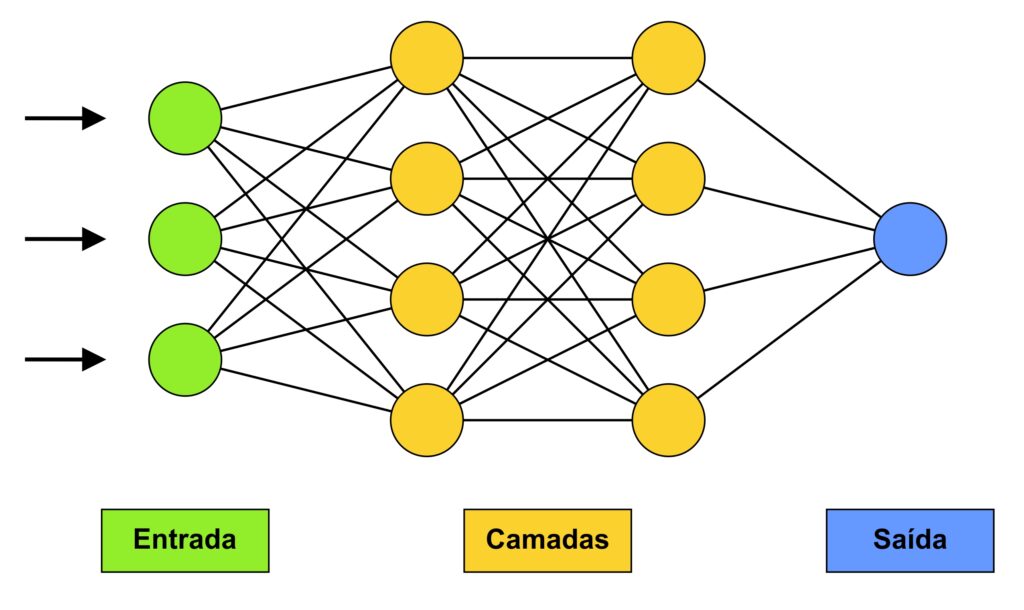
O avanço nos modelos computacionais no estudo de fósseis tem sido perceptível. Eles tem sido principalmente aplicados em fotografias, com o objetivo de classificação dos fósseis. A técnica mais utilizada nas últimas décadas corresponde ao algoritmo de redes neurais, o que é identificado tanto na paleontologia, quanto em outras áreas da Ciência. Trata-se de uma técnica de aprendizagem em que se introduz uma matriz de equações aos dados numéricos, a fim de minimizar iterativamente a função perda, e alcançar seu valor ótimo durante o treinamento. A rede neural é estruturada em camadas, as quais permitem modelar, de forma mais satisfatória, relações não-lineares entre os dados, determinando a profundidade e a complexidade do modelo proposto. Desta forma, o algoritmo mimetiza a estrutura do sistema nervoso, em que a informação é passada por sequências de neurônios (Fig. 2).
Figura 2. Modelo de funcionamento do algoritmo de redes neurais artificiais. A partir de uma entrada numérica, a informação é passada pelos neurônios (círculos) através de equações (conexões), até produzirem um resultado final (saída).
Um notável exemplo de aplicação e desenvolvimento da técnica é de um estudo preliminar realizado em 1996, com fins de classificação de algas calcárias fósseis (cocolitóforos). Nesse estudo, Dollfus e Beaufort (1996) utilizaram a técnica da transformada de Fourier combinada com as redes neurais artificiais em duas camadas, o que resultou em um modelo com taxa de acerto de somente 49%. Entretanto, no trabalho sucessor publicado três anos depois, o modelo de redes neurais artificiais foi aprofundado para 5 camadas, obtendo, assim, uma acurácia de 86%, a uma taxa de 40 classificações por segundo (Dollfus e Beaufort, 1999). Outro exemplo é o trabalho de Lallensack e colaboradores (2022), em que os autores visaram distinguir imagens de pegadas de dinossauros terópodes das pegadas dos ornitísquios, por meio de rede neurais com múltiplas camadas de neurônios, alcançando uma taxa de acertos também de 86%.
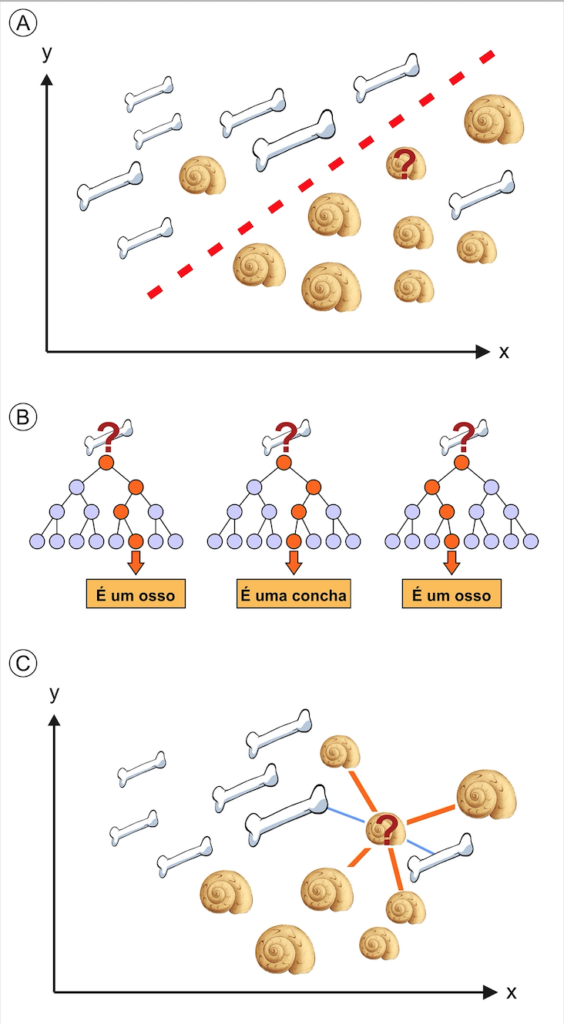
Apesar do avanço na aprendizagem profunda, as técnicas tradicionais de aprendizagem da máquina ainda são bastante utilizadas. Entre os vários algoritmos de aprendizagem existentes, se destacam três na paleontologia: máquina de vetores de suporte, floresta aleatória, e k-vizinhos mais próximos. O primeiro método de treinamento, a máquina de vetores de suporte, consiste em encontrar a divisão ótima do espaço, obtendo um hiperplano que separe dados distintos o máximo possível (Fig. 3A). A eficácia deste algoritmo foi certificada por Xu e colaboradores (2020), num estudo que visava, através de imagens, determinar de forma automatizada se existiam microfósseis ou não, alcançando acurácia de 85%. Por outro lado, ao repetir o experimento com a técnica de redes neurais, supostamente superior, o resultado foi insatisfatório, chegando a 0% de acerto para certas classes, em parte devido ao conjunto limitado de dados. Já o algoritmo da floresta aleatória cria múltiplas árvores de decisão, construídas através de subconjuntos de dados definidos aleatoriamente. A classificação ocorre pelo voto da maioria das árvores em uma determinada classe (Fig. 3B). No trabalho de Wills e colaboradores (2023), o modelo de floresta aleatória foi utilizado para determinar, através da morfologia, se dentes de terópodes fósseis eram ou não de maniraptores (grupo de celurossauros). Estimou-se uma eficácia de 86% para o modelo de floresta aleatória, o resultado mais satisfatório dentre os testados pelos autores. Por fim, a técnica dos k-vizinhos mais próximos (Fig. 3C) estima a classe de novas amostras baseada na classificação de uma quantidade k de dados mais próximos utilizados para treinamento (por exemplo, os k espécimes mais semelhantes entre si). Cita-se o trabalho de Conceição e colaboradores (2023), realizado por pesquisadores brasileiros, em que 42 gêneros de gimnospermas paleozoicas foram utilizados para treinar um modelo de classificação de plantas fósseis em ordens taxonômicas pré-conhecidas, por meio de variáveis da anatomia dos troncos, através desta técnica na versão de 1-vizinho mais próximo.
Figura 3. Os três métodos de aprendizagem da máquina mais utilizados em paleontologia. O ponto de interrogação indica uma entrada nova ao modelo treinado. A) máquina de vetores de suporte, em que as conchas são separadas dos ossos por um hiperplano (em vermelho), determinando a entrada nova como uma concha; B) floresta aleatória, em que a maioria das árvores elege a categoria osso para a entrada; C) k-vizinhos mais próximos, na versão 6-vizinhos mais próximos, em que se elege a classe concha para a entrada nova.
Perspectivas para o futuro
Sem dúvida, a inteligência artificial ainda possui um grande campo a ser explorado dentro da paleontologia. A automatização de métodos dispendiosos, tal como a classificação de um grande número de microfósseis, vem a atenuar a dificuldade dessa tarefa. Dessa maneira, os paleontólogos poderiam se concentrar em trabalhos com viés mais intelectual em detrimento de tarefas mecanizadas. Além disso, embora a definição dos algoritmos e seus hiperparâmetros consistam em uma escolha do pesquisador, a utilização da máquina vem a reduzir o nível de subjetividade empregada nos métodos tradicionais de análise.
Há, no entanto, grandes desafios a serem superados. A tridimensionalidade dos macrofósseis exige um poderio computacional maior e a utilização de técnicas mais complexas, sugerindo que a paleontologia abrace o espaço da Big Data, o que preceitua volume, variedade, velocidade, e veracidade dos dados. Entretanto, o volume de dados e sua velocidade de coleta costumam ser bastante limitados quando se trata de fósseis. Além disso, o registro paleontológico é raro e depende do grau de preservação, o que pode gerar falta de dados ou vieses no treinamento. Essa dificuldade pode nunca ser superada para alguns grupos fósseis ou tipos de pesquisas.
Em relação aos modelos, a expectativa é o aumento na profundidade das aprendizagens, com algoritmos multicamada. Técnicas mais sofisticadas, como as redes adversárias generativas, ainda pouco aplicadas pela comunidade paleontológica, devem se sobressair à medida que a inteligência artificial se torna cada vez mais comum. Resume-se em um modelo de redes neurais dupla: um gerador e um discriminador, os quais competem entre si para produzir saídas mais próximas possíveis. Com novas técnicas, as partes incompletas de esqueletos, por exemplo, poderão ser estipuladas automaticamente, auxiliando nas reconstruções filogenéticas.
No futuro, a inteligência artificial deverá envolver a descrição comparativa de fósseis, classificação, processamento de dados de imagens e codificação de caracteres morfológicos, auxiliando na condução de estudos em larga escala baseados em dados. Essa união entre a inteligência artificial e a paleontologia abrirá novas perspectivas de pesquisa e descoberta, oferecendo compreensões inovadoras sobre a evolução da vida na Terra e a história dos seres vivos que habitaram nosso planeta.
Referências
Conceição, D.M., Esperança Júnior, M.G.F., Iannuzzi, R., Recamonde-Mendoza, M., Malta, G.B.B.O. 2023. PaleoWood: a machine learning approach for determining the affinity of Paleozoic gymnosperm woods. Journal of South American Earth Sciences, 121, 104125. Dollfus, D., Beaufort, L. 1996. Automatic pattern recognition of calcareous nanoplankton. Proceedings of the Conference on Neural Networks and their Applications (NEURAP 96), pp. 306–311. Dollfus, D., Beaufort, L. 1999. Fat neural network for recognition of position-normalised objects. Neural Networks, 12, pp. 553–560. Healy-Williams, N. 1983. Fourier shape analysis of Globorotalia truncatulinoides from late Quaternary sediments in the southern Indian Ocean. Marine Micropaleontology, 8, pp. 1–15. Healy-Williams, N. 1984. Quantitative image analysis: Application to planktonic foraminiferal paleoecology and evolution. Geobios, 17, pp. 425–432. Lallensack, J.N., Romilio, A., Falkingham, P.L., 2022. A machine learning approach for the discrimination of theropod and ornithischian dinosaur tracks. Journal of the Royal Society Interface, 19(196), 20220588. Wills, S. Underwood, C.J., Barrett, PM. 2023. Machine learning confirms new records of maniraptoran theropods in Middle Jurassic UK microvertebrate faunas. Papers in Palaeontology, 9, e1487. Xu, Y.X., Dai, Z., Wang, J., Li, Y., Wang, H. 2020. Automatic recognition of Palaeobios images under microscope based on machine learning. IEEE Access, 8, pp. 172972–172981. Yu, C., Qin, F., Watanabe, A., Yao, W., Li, Y., Qin, Z., Liu, Y., Wang, H., Jiangzuo, Q., Hsiang, A.Y. and Ma, C. 2024. Artificial intelligence in paleontology. Earth-Science Reviews, 104765.
Os terópodes são um grupo de dinossauros que surgiu há mais de 200 milhões de anos e habitam todos os continentes ainda hoje. Eles são conhecidos por suas adaptações que os tornaram os mais rápidos e aerodinâmicos de todos os dinossauros. Uma das principais características que contribuíram pra sua agilidade e resistência foi o sistema de sacos aéreos, que permitiu uma respiração mais eficiente e a capacidade de invadir os ossos do esqueleto com câmaras pneumáticas. Esse sistema é fundamental para entender a evolução dos terópodes e sua adaptação pra estes diferentes ambientes.
Hoje vamos falar sobre nosso artigo recente que desvendou um mistério sobre a evolução dos dinossauros terópodes. Este artigo, publicado na revista Journal of Anatomy, investiga a evolução do sistema de sacos aéreos em terópodes, esse grupo de dinossauros que inclui os mais longevos e os únicos que sobreviveram até hoje, na forma das aves.
Recentemente, pesquisadores descobriram que o sistema de sacos aéreos evoluiu pelo menos três vezes de forma independente nos avemetatarsalianos, um grupo que inclui pterossauros, saurópodes e terópodes. Enquanto os saurópodes apresentam uma arquitetura pneumatizada complexa em suas vértebras, os terópodes ainda são menos compreendidos nesse aspecto.
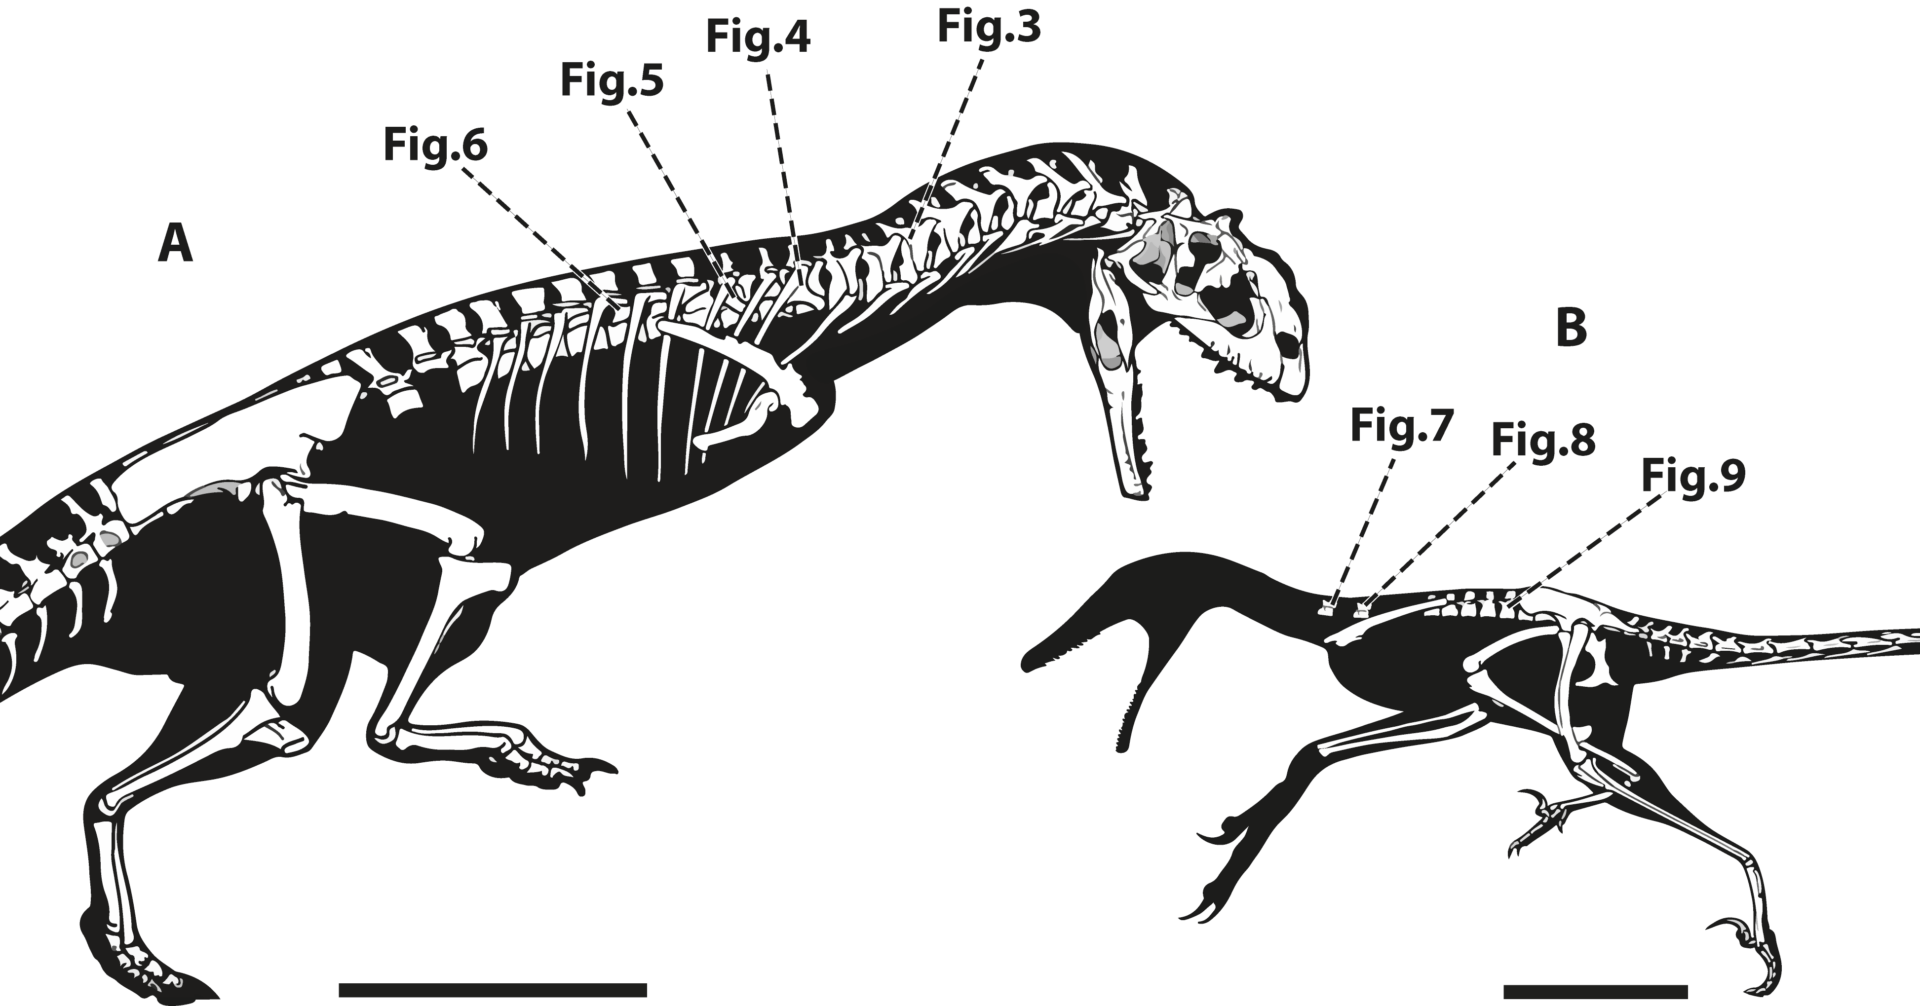
Nesse estudo, nós analisamos o esqueleto axial de dois dinossauros terópodes: Majungasaurus, um ceratosauriano, e Rahonavis, um paraviano. Ambos foram encontrados na Formação Maevarano, no norte da Madagascar, durante expedições realizadas nos últimos 30 anos. Nossa equipe utilizou a tomografia computadorizada desses fósseis pra detectar padrões de pneumatização nos ossos e comparar com outros grupos de terópodes.
Figura apresentando o ceratossauriano Majungasaurus (esquerda) e o paraviano Rahonavis, mostrando os elementos ósseos tomografados. Fonte: Aureliano et al. (2024).
O estudo revelou que o Majungasaurus, um dinossauro cuja linhagem se encontra mais próxima à origem dos terópodes, apresenta algumas vértebras com espinhos neurais e centros sem pneumaticidade. Isso sugere que a pneumatização nos terópodes pode ter evoluído de forma diferente da observada nos saurópodes. Por outro lado, Rahonavis, um paraviano próximo aos raptores e das aves, apresenta uma pneumatização mais complexa, o que pode ter proporcionado vantagens em voos e escaladas.
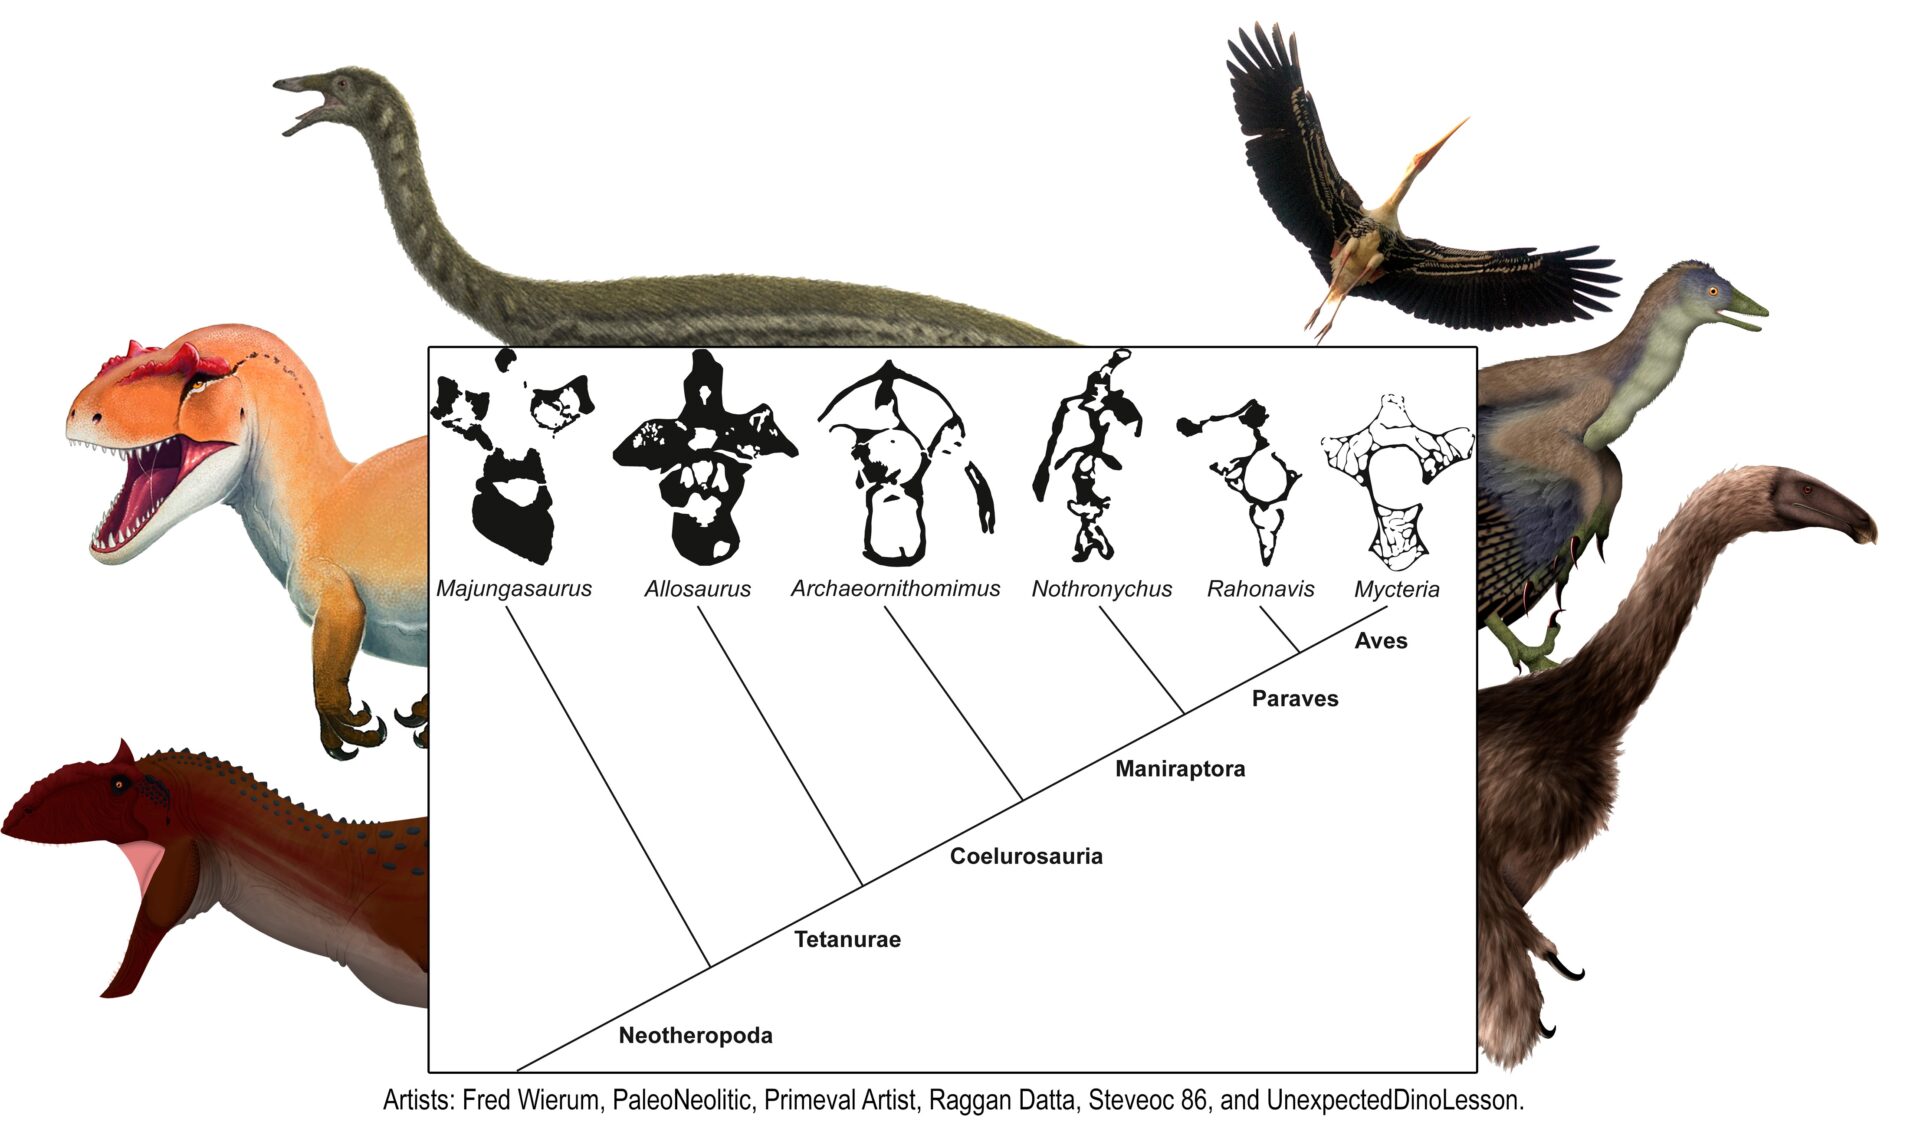
Figura acima apresenta a tomografia computadorizada de vértebras cervicais de diversos terópodes. Note o aumento do volume e da complexidade da pneumaticidade desde os Ceratosauria até as Aves. Fonte: Aureliano et al. (2024).
Comparando com outros dinossauros terópodes representantes dos grandes grupos, é possível observar um aumento na pneumaticidade e na complexidade destas estruturas desde o Majungasaurus até as cegonhas de hoje em dia.
A compreensão da evolução do sistema de sacos aéreos nos terópodes tem implicações para a biologia evolutiva e para a paleontologia. Ela pode ajudar a elucidar como os dinossauros se adaptaram a diferentes ambientes e como essas adaptações influenciaram na sua sobrevivência. Além disso, futuros estudos sobre os primeiros terópodes vão poder fornecer mais informações sobre a evolução deste sistema.
Essa pesquisa foi financiada pela Fundação Norte-Rio-Grandense de Pesquisa e Cultura, e pela Fundação Cearense de Apoio ao Desenvolvimento Científico e Tecnológico.
Vídeo do nosso canal sobre esta pesquisa:
Bibliografia:
Aureliano, T., Almeida, W., Rasaona, M., & Ghilardi, A. M. 2024. The evolution of the air sac system in theropod dinosaurs: Evidence from the Upper Cretaceous of Madagascar. Journal of Anatomy. Link: https://doi.org/10.1111/joa.14113